
Ratlarda Dosetaksel Kaynaklı Testis Toksisitesi Üzerine Silimarinin Etkileri: Biyokimyasal, Moleküler ve Histopatolojik Değerlendirme
Cilt 34, Sayı 1
Ocak 2020 · Sayfalar 013-021
Ratlarda Dosetaksel Kaynaklı Testis Toksisitesi Üzerine Silimarinin Etkileri: Biyokimyasal, Moleküler ve Histopatolojik Değerlendirme
The Effects of Silymarin on Docetaxel Induced Testis Toxicity in Rats: Biochemical, Molecular and Histopathological Evaluation
Sefa KÜÇÜKLER1, Selim ÇOMAKLI2, Selçuk ÖZDEMİR3, Fatih Mehmet KANDEMİR1
2Atatürk Üniversitesi, Veteriner Fakültesi, Patoloji Anabilim Dalı, Erzurum, TÜRKİYE
3Atatürk Üniversitesi, Veteriner Fakültesi, Genetik Anabilim Dalı, Erzurum, TÜRKİYE
Bu çalışmanın amacı; farklı kanser türlerinin tedavisinde yaygın olarak kullanılan dosetaksel (DTX) kaynaklı testis hasarına karşı doğal bir antioksidan olduğu bilinen silimarin (SLM)’in etkilerinin araştırılmasıdır. Çalışmada 35 adet erkek Spraque Dawley rat rastgele 5 gruba ayrıldı: Kontrol grubu, DTX uygulanan grup, SLM 50 mg/kg uygulanan grup, DTX+SLM 25 mg/kg uygulanan grup, DTX+SLM 50 mg/kg uygulanan grup. DTX’in glutatyon peroksidaz (GPx), süperoksit dismutaz (SOD) ve katalaz (KAT) gibi antioksidan enzim aktivitelerini ve glutatyon (GSH) düzeylerini azaltıp, lipid peroksidasyonunu (LPO) artırarak oksidatif hasarı tetiklediği belirlendi. Ayrıca DTX ile kombine uygulanan SLM uygulamasının GSH seviyesini ve antioksidan enzim aktivitelerini arttırdığı, lipid peroksidasyonunu ise azalttığı ettiği tespit edildi. Çalışmada apoptozis belirteçlerinden kaspaz 8 ve 9 seviyelerinin DTX grubunda gen ekspresyonu düzeyinde, kaspaz 3 seviyesinin ise immunhistokimyasal incelemede arttığı, SLM uygulaması ile bu belirteçlerin düzeylerinde azalma olduğu gözlendi. Sonuç olarak; DTX kaynaklı testis toksisitesinde SLM’in anti-oksidan ve anti-apoptotik etki gösterdiği tespit edilmiş ve alternatif tıpta kullanılabilmesi için ileri düzey çalışmaların gerekliliği ortaya konmuştur.
The aim of the present study was to investigate the effects of the slymarin (SLM), which is known to be a natural antioxidant against testicular damaged induced by dosetaksel (DTX), which is commonly used in the treatment of various cancer types. In this study, 35 male Spraque Dawley rats were randomly divided into 5 groups: Control group, DTX-treated group, SLM -treated group (50 mg/kg), DTX+SLM -treated group (25 mg/kg), and DTX+SLM -treated group (50 mg/kg). It was determined that DTX induced oxidative damage by decreasing glutathione peroxidase (GPx), superoxide dismutase (SOD) and catalase (CAT) activities and decreasing glutathione (GSH) levels and increasing lipid peroxidation. In addition, it was determined that SLM application increased GSH level and antioxidant enzyme activities and inhibited lipid peroxidation (LPO). In the study, it was observed that caspase 8 and 9 levels, one of the apoptosis markers, increased gene expression level in the DTX group and caspase 3 level increased in immunohistochemical examination, and decreased levels of these markers with SLM application. As a result; It has been determined that SLM shows anti-oxidant and anti-apoptotic effects in DTX-induced testicular toxicity and further studies are required for its use in alternative medicine.
Giriş
Kemoterapi, çeşitli kanser türlerinin tedavisinde kullanılan başlıca yöntemlerden biridir ve etkinliğini artırmak için farklı antineoplastik ilaç kombinasyonlarının kullanılmasına izin verir. Bununla birlikte, hem kanser hem de kemoterapiyle ilişkili komplikasyonlar, önemli ölçüde mortaliteye neden olmaktadır. Kemoterapinin amacı sadece tümör hücrelerini ortadan kaldırmaktır. Bununla birlikte, antineoplastik ilaçların çoğu, spesifik olmayan, hem malign hem de normal hücrelere zarar verir [1]. Taxus baccata'dan (Avrupa porsuk ağacı) bir taksoit özütü olan Dosetaksel (DTX), farklı kanser türlerinin tedavisinde yaygın olarak kullanılmaktadır. DTX, yarı sentetik bir paklitaksel analoğudur ve gastrointestinal, meme, küçük hücreli olmayan akciğer, prostat, yumurtalık ve baş boyun kanserleri de dahil olmak üzere çeşitli solid özellikteki malignitelerde antitümör aktivitesine olup, DTX normal dokularda ve sıçan testisi dahil olmak üzere birçok organda olumsuz etkiye neden olabilir [2,3]. Ayrıca, kemoterapötiklerin, testis dahil farklı dokularda oksidatif stresi indüklediği gösterilmiştir. Reaktif oksijen türleri (ROS), memeli dokularında hem fizyolojik hem de patolojik koşullarda oluşur; reaktiviteleri yüksek olduklarından, ROS oksidatif stresi indükleyen biyomoleküller ile etkileşime girebilir [4]. Aşırı ROS üretimi, lipidlerin, proteinlerin ve karbonhidratların peroksidasyonuna, erkek germ hücrelerinde DNA hasarı ve apoptozise neden olur [5].Testis, prosurvival ve proapoptotik sistemlere sahip çok aktif bir organdır. Bu sistemler, germ hücre apoptozisini organize etmek için birlikte çalışır. Normal olarak, germ hücrelerinin üretimi, seminifer epitelde fizyolojik apoptoz ile düzenlenir. Bununla birlikte, testis toksik maddelere maruz kaldığında apoptoz belirgin şekilde artar. Seminifer epitelde aşırı apoptotik aktiviteye bağlı disfonksiyon, germ hücrelerinde ciddi hasarlara neden olur [6].
Günümüzde, kemoterapötiklerin erkek üreme sistemindeki yan etkilerini önlemek için birçok doğal antioksidan kullanılmaktadır [5]. Silybum marianum tohumlarından elde edilen ve bilinen bir standart özüt olan silimarin (SLM), çeşitli orijinli karaciğer hastalıklarının tedavisinde yaygın olarak kullanılmaktadır [7]. SLM sadece ROS ile reaksiyona girerek güçlü bir antioksidan madde olarak hareket etmenin yanında, aynı zamanda glutatyon ve süperoksit dismutaz gibi fizyolojik antioksidanların etkilerini artırarak antioksidan etki göstermektedir [8].
Bu çalışmada, DTX’in rat testisindeki toksik yan etkilerini ve SLM’nin biyokimyasal, histopatolojik ve gen ekspresyonu yöntemleri ile antioksidan ve antiapoptotik etkilerinin araştırması amaçlanmıştır.
Gereç ve Yöntem
Kullanılan Deney Hayvanları: Deneyde ağırlıkları 250-300 g, yaşları 10-12 haftalık olan erkek Spraque Dawley cinsi rat kullanıldı. Hayvanlar 24-25 °C sabit sıcaklık ve oniki saatlik karanlık aydınlık siklüsü (07:00–19:00 aydınlık; 19:00–07:00 karanlık) sağlanarak kontrollü bir odada, kafeslerde tutuldu. Deneme öncesinde ratların 7 gün süreyle ortama adaptasyonları sağlandı. Hayvanlara yem ve su ad libitum olarak verildi. Bu çalışma Atatürk Üniversitesi Rektörlüğü Hayvan Deneyleri Yerel Etik Kurulu Başkanlığı tarafından onaylandı (Karar No: 132/2019).
Çalışmada Kullanılan İlaçlar
Dosetaksel (DTX): Çalışmada DTX kaynağı olarak doxitax (80mg/4 mL, Koçak Farma) kullanıldı. Verilen doz literatürde belirtildiği şekilde uygulandı [9].
Silimarin (SLM): Çalışmada kullanılan antioksidan SLM Sigma‐Aldrich firmasından temin edildi. Çalışmada kullanılmış olan doz literatürde belirtildiği şekilde uygulandı [10].
Deneysel Uygulamalar: Çalışma her bir grupta Spraque Dawley cinsi 7 adet erkek rat bulunan 5 farklı gruptan oluşmaktadır. Gruplar şu şekilde dizayn edilmiştir.
1. Kontrol Grubu: 7 gün boyunca oral yolla ve sadece 1 gün 1 mL intraperitonel (i.p) olarak serum fizyolojik verildi.
2. Silimarin 50 Grubu (SLM50): 7 gün boyunca 50 mg/kg oral yolla SLM verildi.
3. Dosetaksel Grubu (DTX): 1. gün 30 mg/kg DTX tek doz i.p olarak verildi.
4. Dosetaksel + Silimarin 25 Grubu (DTX+SLM25): 1. gün 30 mg/kg dozda DTX tek doz i.p uygulanmasından 30 dk. sonra 7 gün süre ile SLM 25 mg/kg/gün dozunda oral olarak verildi.
5. Dosetaksel + Silimarin 50 Grubu (DTX+SLM50): 1. gün 30 mg/kg DTX tek doz i.p uygulanmasından 30 dk. sonra 7 gün süre ile SLM 50 mg/kg/gün dozunda oral olarak verildi.
Numunelerin Alınması: Son SLM uygulamasından 24 saat sonra (8. gün) ratlar sevofloran anestezisi altında dekapite edildi ve testis dokuları alınarak gen ekspresyonu ve biyokimyasal analizler yapılıncaya kadar –80 °C’de muhafaza edildi. Alınan testis dokuları sıvı azot kullanılarak TissueLyser II (Qiagen)’de öğütüldü. Yapılan analizler öncesinde testis dokularından gerekli olan miktarlarda tartıldı ve metodlarda belirtilen tamponlar ile sulandırılarak TissueLyser II (Qiagen) ile homojenizasyon yapıldı.
Biyokimyasal Analizler: Testis homojenatlarında MDA ölçümü Placer ve ark. [11]’nın, GSH düzeyleri Sedlak ve Lindsay [12]’in, GPx aktivitesinin ölçümü Matkovics [13]’in , SOD aktivitesinin ölçümü Sun ve ark. [14]’nın, KAT aktivitesi Aebi’nin metoduna göre spektrofotometrik olarak ölçüldü [15]. Homojenattaki protein konsantrasyonu, Lowry ve ark [16].’nın metoduna göre belirlendi.
Histopatolojik İnceleme: Histopatolojik testler standart laboratuvar prosedürleri uygulanarak gerçekleştirildi. Ratlardan alınan testis dokuları 24 saat boyunca %10’luk tamponlu formaldehit solüsyonunda tespit edildi. Fiksasyondan sonra testisler akan su ile formaldehitten arındırıldı ve rutin alkol-ksilol aşamasından sonra parafin bloklara gömüldü, daha sonra 5 μ kalınlıkta kesitler normal ve polilizinli lamlara alındı. Normal lam üzerine alınan dokulara hematoksilen-eozin (HE) boyama uygulandı. Son olarak, testislerde gözlenen histopatolojik değişiklikler ışık mikroskobu altında incelendi (Zeiss, AX10 Scope A1, Almanya).
İmmunhistokimyasal Boyama: Polilizinli lam üzerine 5 μ kalınlığında alınan kesitler, 57 °C'de 1 saat boyunca etüvde bekletildi. Ksilol ve alkol uygulamalarında sonra kesitler 5 dk boyunca distile suda bekletildi. Dokular endojen peroksidazı inaktive etmek için %0.3’lük H2O2 solüsyonunda bekletildikten sonra antijen retrieval aşaması için sodyum sitrat solüsyonu ile 10 dk yüksek sıcaklıktaki bir mikrodalga fırında ısıtıldı. Dokular oda sıcaklığında 20 dk soğutulduktan sonra, spesifik olmayan boyanmaları önlemek amacıyla 10 dk boyunca protein blok solüsyonunda bekletildi. Dokular daha sonra primer antikor ile (Caspase-3, Santa Cruz Biotechnology, Katalog no: sc-56053, dilusyon oranı 1:100) 30 dk süreyle inkübe edildi. PBS ile yıkamadan sonra, dokulara sekonder antikor (Mouse and Rabbit Specific HRP/DAB IHC Detection Kit, ab 236466, Abcam) üretici firmanın belirtmiş olduğu şekilde uygulandı. Daha sonra DAB kromojeni ile boyanmalar görünür hale getirildi ve Mayer’s hematoksilen ile zıt boyandı. Kesitler entellan ile kaplandı ve ışık mikroskobu altında immunpozitiflikler pozitifliğin yoğunluğuna göre yok: 0, zayıf: 1, orta: 2, yoğun boyanma: 3 şeklinde incelendi (Zeiss, AX10 Scope A1, Almanya).
Total RNA İzolasyonu: Deneysel gruplardaki ratlardan elde edilen testis dokularından Trizol kullanılarak total RNA izolasyonu yapıldı. Bu işlem kitin prosedürüne uygun olarak yapıldı. Total RNA izolasyonunda sonra RNA konsantrasyonu spektrofotometre ile ölçüldü. Total RNA kalitesini kontrol etmek amacıyla RNA’lar %1.5’lik agaroz jel de 1XTBE solusyonu içerisinde 80 voltta bir saat yürütüldü ve jel görüntüleme sistemi ile görüntülenerek RNA kalitesi belirlendi.
Primer Dizayn: Apoptozis ile ilişkili olan kaspaz 8 ve 9 genlerine ait ekspresyon seviyelerinin Real Time PCR ile ölçülebilmesi için gerekli primer dizileri http://bioinfo.ut.ee/primer3-0.4.0/ ilgili linkindeki Primer Design-3 programı kullanılarak tasarlandı. Tasarlanan primer dizileri daha önce herhangi bir çalışmada kullanılmamıştır. Dolayısıyla bu çalışmanın araştırmacıları tarafından özel olarak tasarlanmıştır.
DNaz I Uygulaması ve cDNA çevrimi: İzole edilen RNA örneklerinde DNA kontaminasyonuna karşı DNaz I (Thermo Scientific) kullanıldı. Dnaz I uygulaması kitte verilen protokole uygun olarak yapıldı. Daha sonra bu RNA’lardan 2-5 µg alındı ve miScript Reverse Transcription Kiti (Qiagen) verilen protokole uygun şekilde kullanılarak cDNA sentezlendi. Elde edilen cDNA’nın saflığı ve miktarı spektrofotometrede yapılan 260-280 nm absorbans ölçümleri ile belirlendi ve cDNA’lar aynı oranlarda sulandırıldı. Daha sonra Real Time PCR çalışmalarında kullanılmak üzere –20 °C de muhafaza edildi.
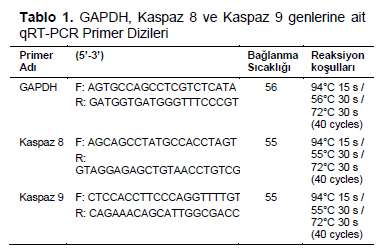
Real Time PCR: Kaspaz 8 ve 9 genlerinin mRNA transkript seviyelerini ölçmek amacıyla Qiagen Rotor Gene HRM marka cihaz kullanılarak qRT-PCR yapıldı. İnternal kontrol olarak GAPDH geni kullanıldı. Real time PCR deneylerinde oluşturulan master mix içeriği; Syber Green 2X Rox Dye Master mix (Qiagen), genler için tasarlanmış forward ve reverse primerler, template olarak cDNA’lar ve nükleaz free su master mixler hazırlandıktan sonra örnekler Real Time cihazında analiz edildi ve elde edilen Ct değeleri 2-DeltaDeltaCt metoduna uygun olarak hesaplanarak ilgili genlerin ekspresyon seviyeleri belirlendi [17]. Genlerin reaksiyon koşulları ve primer dizileri Tablo 1’de gösterilmiştir.
İstatistiksel Analiz: Çalışmadan elde edilen tüm verilerin istatistiksel analizi SPSS 20.0 yazılımı kullanılarak yapıldı. İstatistiksel farklılıklar ve anlamlılık düzeyleri tek yönlü varyans analizi (ANOVA) testi ile belirlenmiş olup çoklu karşılaştırmalar için Tukey’s HSD testi uygulandı. P<0.05 seviyesindeki sonuçlar anlamlı kabul edildi. İmmunhistokimyasal verilerin analizi parametrik olmayan Kruskal Wallis testi ve Mann-Whitney U testi kullanıldı. Ayrıca genlere ait ekspresyon seviyeleri analiz etmede GrapPad 7.2 (California, USA) programı kullanıldı.
Bulgular
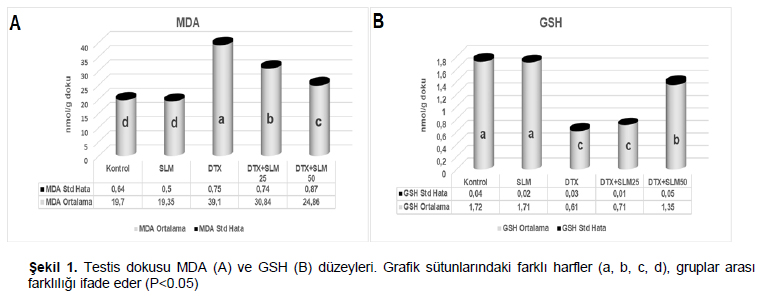
Biyokimyasal Değerlendirme: Dosetaksel uygulaması, kontrol grubu ile karşılaştırıldığında testis dokusundaki MDA seviyesinde önemli derecede artışa neden oldu. DTX ile uygulanan SLM’nin kombine dozlarının uygulaması ile artan bu MDA düzeylerinde önemli derecede azalmayı sağladığı belirlendi (Şekil 1a, P<0.05). Benzer şekilde DTX uygulaması, kontrol ve sadece SLM uygulanan gruba kıyasla anlamlı şekilde testis dokusundaki GSH depolarının tükenmesine yol açtığı (Şekil 1b, P<0.05) gözlendi. SLM (50 mg/kg doz) uygulamasının, GSH düzeyini DTX ve SLM 25 mg/kg doz uygulanan gruplara kıyasla anlamlı şekilde artırdığı tespit edildi.
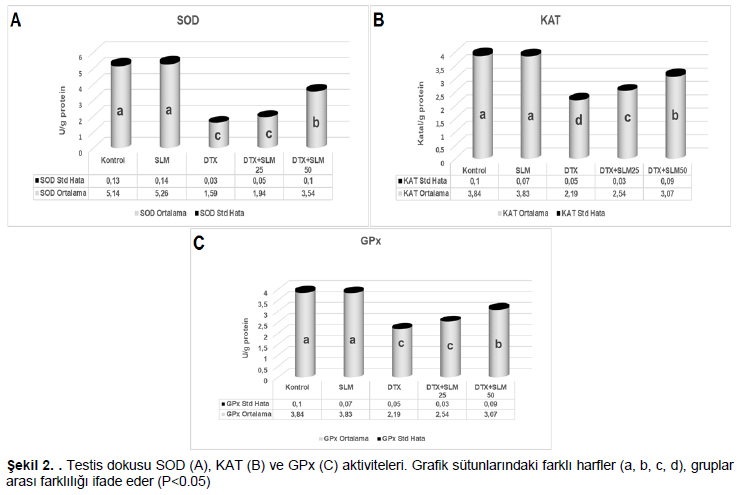
Silimarin ve DTX uygulamalarının testis dokusunda SOD, KAT ve GPx enzim aktiviteleri üzerindeki etkileri Şekil 2'de verilmiştir. Elde edilen veriler rat testislerinde benzer şekilde DTX uygulamasının antioksidan enzim aktivitelerinde önemli bir azalmaya (P<0.05) sebep olduğunu göstermiştir. DTX ile SLM (25 ve 50 mg/kg doz) uygulaması, sadece DTX uygulanan ratlara kıyasla bu enzimatik antioksidan enzim aktivitelerini önemli ölçüde artırdığı (P<0.05) tespit edildi. Kontrol ve sadece SLM uygulanan gruplar arasında anlamlı fark olmadığı belirlendi (P>0.05) (Şekil 2a, b ve c).
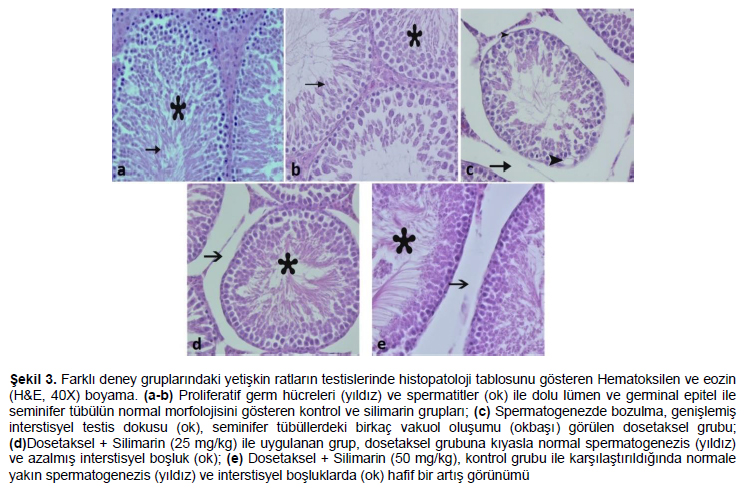
Histopatolojik Değerlendirme: Şekil 3’de gösterildiği gibi, testislerde önemli histopatolojik değişiklikler DTX uygulanan grupta gözlendi. Kontrol ve SLM gruplarında, normal testis interstisyel alanı gözlenmekle birlikte seminifer tübüller, lümenlerinde fazla sayıda sperm hücresi içermekteydi. Sertoli hücreleri ve spermatojenik hücreler, seminifer tübüllerde düzenli bir şekilde sıralanmıştı (Şekil 3a ve b). Kontrol ve SLM grupları ile karşılaştırıldığında, DTX uygulanan gruptaki ratların testislerinde genişlemiş interstisyel testis dokusu, seminifer tübüllerde birkaç vakuol ve spermatojenik hücrelerin düzensiz sıralanması ile bu hücrelerin sayıca azaldığı görüldü (Şekil 3c). DTX ile birlikte farklı dozlarda SLM (25 ve 50 mg/kg doz) uygulanan gruplarda ise genişlemiş intersitsiyel doku tablosunun devam ettiği ancak seminifer tubullerdeki spermatojenik hücrelerin sayısının ve dizilişinin kontrol ve SLM uygulanan gruplar ile benzer olduğu belirlendi (Şekil 3d ve e).
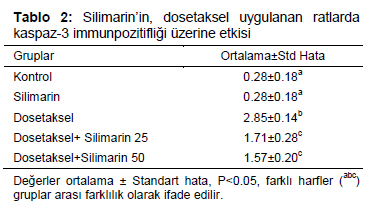
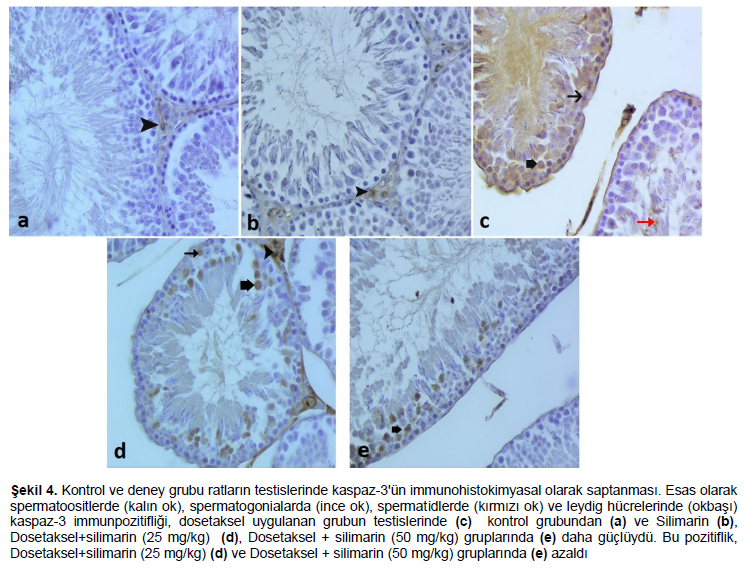
İmmunhistokimyasal İnceleme: Kaspaz-3 için immunhistokimyasal boyamadaki pozitif hücreler kahverengi boyama şeklinde görülmektedir. Kontrol ve SLM uygulanan gruplarda seminifer tubüllerde kaspaz-3 immunpozitifliği gözlenmedi (Şekil 4a ve b). DTX uygulanan grupta, spermatogonia hücrelerinde, primer spermatositlerde ve spermatidlerde yoğun kaspaz-3 immunpozitifliği tespit edildi (Şekil 4c). DTX ile birlikte SLM uygulanan gruplarda ise spermatogonia hücrelerinde, primer spermatositlerde pozitifliğe rastlanmasına rağmen yoğunluğun toksik gruba göre daha az olduğu belirlendi (Şekil 4d ve e). İstatistiksel olarak gruplar arasında önemli farklılık gözlendi (P<0.05). Kontrol ve SLM grupları ile diğer gruplar arasında kaspaz-3 immunpozitifliği açısından önemli farklılıklar gözlendi (Tablo 2, P<0.05). DTX grubu ile diğer gruplar arasında da anlamlı derecede fark vardı (Tablo 2, P<0.05). DTX ile birlikte uygulanan SLM’nin farklı dozları diğer gruplar ile anlamlı olarak farklılık gösterirken SLM uygulaması kaspaz-3 immunpozitifliğini azaltmasına rağmen her iki doz arasında anlamlı bir fark gözlenmedi (Tablo 2, P>0.05).
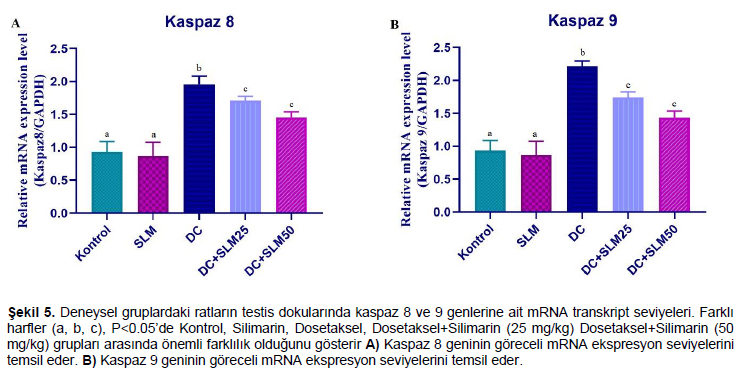
Kaspaz 8 ve 9 Genlerine Ait Ekspresyon Profilleri: Çalışma sonucunda elde edilen qPCR verileri incelendiğinde, kontrol ve SLM gruplarında kaspaz 8 ve 9’un ekspresyon profilinde herhangi bir değişimin olmadığı (P>0.05) ancak sadece DTX uygulanan ratların testis dokularında kaspaz 8 ve 9’un mRNA transkript seviyesinin arttığı gözlemlendi (P<0.01). Bunun yanında özellikle DTX ile birlikte SLM 25 ve 50 mg/kg dozları uygulanan gruplarında kontrol ve SLM gruplarına göre kaspaz 8 ve 9’un mRNA transkript seviyeleri artmasına rağmen, bu genlere ait ekspresyon seviyesinin sadece DTX uygulanan gruba göre önemli derecede azaldığı belirlendi (P<0.05) (Şekil 5a ve b).
ROS, testis hücreleri de dahil olmak üzere hücresel patogenezde rol oynar [19]. Erkek üreme hücrelerinde sperm fonksiyonlarının korunmasında yağ asitleri çok önemlidir [20]. Spermatozoanın plazma zarı doymamış yağ asitleri bakımından zengin olması peroksidatif hasara karşı eğilimi artırır. Bu şekilde spermatozoanın hareketliliği engellenir ve sperm hücrelerinin fonksiyonları bozulur [21]. Hücreler oksidatif strese karşı çoklu enzimatik mekanizmalar ve antioksidan moleküller tarafından korunmaktadır. Hücre içi antioksidan sistemi, bazı serbest enzim olmayan antioksidanlarla birlikte farklı serbest radikal temizleyici antioksidan enzimleri içerir. SOD, KAT ve GPx aktiviteleri oksidatif hasara karşı hücresel antioksidan savunma enzimlerinin ilk basamağı olarak kabul edilir. Bu hücresel antioksidanlar serbest radikalleri yok etmede önemli bir rol oynar ve bunu denge sistemiyle sağlarlar. Bazı toksik maddelere maruz kalma nedeniyle aşırı serbest radikallerin üretilmesi durumunda, bu denge kaybolur ve dolayısıyla oksidatif hasar meydana gelir [22]. Çalışmada DTX uygulanan ratlarda bu antioksidan enzimlerin seviyeleri anlamlı derecede azaldı.
Çoklu doymamış yağ asidinin oksidasyonunun bir yan ürünü olan MDA, oksidatif stresin belirteçlerinden biridir [23]. MDA düzeylerindeki artışın, aşırı ROS üretimi ile ilgili olduğuda belirtilmiştir [24]. GSH ise hücresel antioksidan görevini yerine getiren önemli bir bileşiktir [25]. GSH düzeyleri, spesifik olmayan bir hücresel toksisite göstergesi olarak değerlendirilebilir. GSH'deki bir azalma ve ardından oksitlenmiş formunun (GSSG) artması, hücresel hasarın göstergesidir [26].
Çalışmada enzimatik enzim aktivitelerinde meydana gelen azalma ve artan MDA seviyeleri, DTX uygulamasından sonra ciddi bir oksidatif stresin oluştuğunu göstermektedir. Bununla birlikte, DTX ile birlikte SLM uygulaması testis dokularındaki SOD, KAT ve GPx antioksidan aktivitelerinde önemli bir artış sağladığı gözlendi. DTX'in bu antioksidan enzim aktiviteleri üzerine azaltıcı etkisi önceki çalışmalarda gösterilmiştir [2,27,28]. Ayrıca farklı çalışmalarda farklı antioksidanların MDA düzeyini azalttığı, GSH düzeyi ile GPx, SOD ve KAT enzim aktivitelerini artırdığı bildirilmiştir [10,29,30]. Çalışmada da DTX ile birlikte SLM antioksidanının uygulanması MDA düzeylerini azaltıp, GSH düzeyleri ile GSH-Px, SOD ve KAT enzim aktivitelerini ise artırmıştır.
Apoptoz normal olarak yetişkin testisinde sertoli hücreleri tarafından desteklenebilecek yeterli sayıda germ hücresini korumak için ortaya çıkar. Fakat, aşırı apoptozis spermatogenezisin bozulmasına ve erkeklerde infertiliteye neden olabilir [31]. Pestisitler, çevresel kirleticiler ve kemoterapötik ilaçlar gibi ksenobiyotiklere maruz kalmak, sıklıkla ROS'un aracılık ettiği apoptozu başlatabilir [32]. Apoptoz, çeşitli dışsal ve içsel sinyallerle tetiklenebilir [33]. Hem dış hem de iç apoptotik yollarda hücre ölümünün indüksiyonu kaspazların aktivasyonu ile ilişkilidir. İki tip olduğu bilinen kaspazlar, başlatıcı kaspazlar (örneğin kaspaz-8 ve -9) ve efektör kaspazlar olarak sınıflandırılır (örneğin; Kaspaz-3, -6 ve -7). Kaspaz-8 esas olarak ekstrinsik apoptotik yolda aktive olurken, kaspaz-9 aktivasyonu mitokondriyal veya intrinsik yolla ilişkilidir [34]. Her iki yol da kaspaz-3'te birleşir ve son olarak hücre ölümünü uyarır [35].
Yapılan çalışmalarda [36-38] DTX uygulamasının apoptozisi indüklediği bildirilmiştir. Bu çalışmada, DTX uygulanan gruptaki ratların testis dokularında kaspaz 8, kaspaz 9 genlerine ait mRNA transkipt seviyeleri ile kaspaz 3 immunreaktivitesi kontrol grubuna göre önemli bir artış saptanmıştır. Elde edilen sonuç DTX’in hem intrinsik hem de ekstrinsik apoptoz yolaklarını aktive ederek testis dokularındaki hücreleri ölüme sürüklediğini belirlemiştir. Bunun yanında iki farklı dozda kullanılan SLM testis dokularındaki apoptoz seviyesini azalttığı gözlemlenmiştir. Bu sonuç, DTX sebebiyle oluşan hücre ölümlerinin antiapoptotik etkili SLM uygulaması ile azaldığını göstermiştir.
Sonuç olarak; DTX uygulamasının testis dokularında hücreleri oksidatif stres ve apoptoza sürükleyerek ciddi hasara neden olduğu ve doğal bir antioksidan madde olarak kullanılan SLM’nin ise oluşan DTX kaynaklı testis hasarını oksidatif stres ve apoptozu azaltarak hafiflettiği tespit edildi. Her ne kadar yararlı etkileri görülse de DTX kaynaklı testis hasarına karşı düzenlenen tedavi protokollerine SLM’nin eklenebilmesi için ileri düzey çalışmalara ihtiyaç duyulmaktadır.
Tartışma
Klinik bir tedavi olarak, DTX çeşitli kanserlerin tedavisi için kemoterapötik bir ilaç olarak yaygın şekilde kullanılmaktadır. DTX, taksan ailesinden modifiye edilmiş bir ilaç olup bu ilacın ana mekanizması kanser hücresi mitozunu baskılamaktır. Ancak, kanser tedavisinde kullanılan DTX'in yan etkilerinin olduğu daha önceki çalışmalarda bildirilmiştir [18]. Her ne kadar DTX’in yan etkileri son zamanlarda bildirilmiş olsa da, SLM’nin DTX’in neden olduğu testis dokusu hasarı üzerindeki etkisi henüz araştırılmamıştır. Bu çalışmada, SLM’nin DTX kaynaklı testis hasarına karşı etkileri araştırıldı. Eş zamanlı olarak, testis dokusu üzerindeki etkinin altında yatan muhtemel moleküler yolaklar, oksidatif stres belirteçleri ve hücre apoptozisi araştırılarak incelenmiştir. SLM’nin DTX’in indüklediği testis hasarını azaltmada önemli etkisi olduğu ve altta yatan mekanizmanın oksidatif stres ve kaspaz sinyal yolları aracılığıyla olabileceği gösterilmiştir.Figures
References
- Effects of Prolonged Low Amounts Some Nitrosoamines Administrations on Oxidative Stress in Blood, Liver and Kidney of Rats
- The Effect of Oxidative Stress Induced by Paraquat on Apoptosis in HepG2 Cells
- Paraquat İle Oluşturulmuş Oksidatif Stresin HepG2 Hücrelerinde Apoptozis Üzerine Etkisinin Araştırılması
- The Effects of Mineral Solution on Stress Parameters in the Transition Cows
- Geçiş Dönemindeki İneklerde Stres Parametreleri Üzerine Mineral Uygulamasının Etkileri