
Östrüs Siklusu Boyunca Sıçan Ovaryumunda ADAMTS-1 Metalloproteinazının Dağılımı
Cilt 37, Sayı 1
Mart 2023 · Sayfalar 021-025
Östrüs Siklusu Boyunca Sıçan Ovaryumunda ADAMTS-1 Metalloproteinazının Dağılımı
Distribution of ADAMTS-1 Metalloproteinase in the Rat Ovarium during the Estrous Cycle
Tuba PARLAK AK1, Özgür BULMUŞ2, Ali BAYRAKDAR3, Mine YAMAN4
2Balıkesir Üniversitesi, Tıp Fakültesi, Fizyoloji Ana Bilim Dalı, Balıkesir, TÜRKİYE
3Balıkesir Üniversitesi, Veteriner Fakültesi, Histoloji ve Embriyoloji Ana Bilim Dalı, Balıkesir, TÜRKİYE
4Fırat Üniversitesi, Veteriner Fakültesi, Histoloji ve Embriyoloji Ana Bilim Dalı, Elazığ, TÜRKİYE
A Disintegrin and Metalloproteinase with Thrombospondins Motifs 1 (ADAMTS-1), ovaryumdaki foliküler gelişim sırasında folikül bütünlüğünü ve işlevselliğini sürdürmek amacıyla yeniden şekillenmede rol oynayan bir metalloproteinazdır. Bu çalışmada, dişi sıçanların farklı östrüs siklusu evrelerindeki ovaryum dokularında ADAMTS-1 immünolokalizasyonu incelendi. Vajinal smear yöntemi ile düzenli siklus gösteren hayvanlar tercih edilerek 18 adet Wistar Albino cinsi sıçan; proöstrüs (Grup I), östrüs (Grup II) ve diöstrüs (Grup III) olmak üzere üç gruba ayrıldı. Proöstrüs evresinde; folikül epitel hücreleri, teka hücreleri, lüteal hücreler ve intersitisyel hücrelerde yoğun ADAMTS-1 immünoreaktivitesi gözlendi. Östrüs evresinde, proöstrüs evresine göre bu ovarian hücrelerde daha az yoğun ADAMTS-1 immünoreaktivitesi belirlendi. Diöstrüs evresinde, boyama yoğunluğunun foliküler hücreler ile teka hücrelerinde östrüs evresine benzer olduğu, lüteal ve intersitisyel hücrelerde ise daha hafif olduğu saptandı. Histoskor verilerine göre, ADAMTS-1 immünoreaktivitesinin proöstrüs evresinde (2.84±0.13) östrüs (1.18±0.07) ve diöstrüs (1.08±0.10) evrelerine göre en yüksek değere (P<0.05) ulaştığı tespit edildi. Sonuç olarak; foliküler gelişim, ovülasyon ve regresyon süreçlerini içeren farklı siklus evrelerinin ekstrasellüler matriksindeki (ESM) yapısal değişikliklerle ilişkili olarak ADAMTS-1 immünoreaktivitesinde farklılıklar belirlendi.
A Disintegrin and Metalloproteinase with Thrombospondins Motifs 1 (ADAMTS-1) is a metalloproteinase involved in remodeling to maintain follicle integrity and functionality during follicular development in the ovary. In this study, ADAMTS-1 immunolocalization was investigated in ovarian tissues of female rats at different oestrus cycle stages. Eighteen Wistar Albino rats were divided into three groups as proestrus (Group I), estrus (Group II) and diestrus (Group III) animals by choosing animals with regular cycles by vaginal smear method. In the proestrus stage, intense ADAMTS-1 immunoreactivity was observed in follicle epithelial cells, theca cells, luteal cells and interstitial cells. In the estrus phase, less intense ADAMTS-1 immunoreactivity was detected in these ovarian cells compared to the proestrus stage. In the diestrus phase, the staining intensity was found similar to the estrus phase in follicular cells and theca cells, but lighter in luteal and interstitial cells. According to the histoscore data, it was determined that ADAMTS-1 immunoreactivity reached the highest value (P<0.05) in proestrus stage (2.84±0.13) compared to estrus (1.18±0.07) and diestrus (1.08±0.10) stages. As a result, differences in ADAMTS-1 immunoreactivity were determined in relation to the structural changes in the extracellular matrix (ECM) of different cycle stages including follicular development, ovulation and regression processes.
Giriş
Ekstrasellüler matriks (ESM), hücreler arası mikroçevrenin önemli yapısal ve fonksiyonel bir komponentidir. ESM’nin yeniden şekillenebilen dinamik yapısı; hücrenin proliferasyon, diferansiasyon, adezyon ve migrasyon gibi fonksiyonları ile membran proteinlerinin yıkımı ve proteolizis gibi biyolojik olayların gerçekleşmesinde önemli bir role sahiptir [1]. ESM’nin esas bileşenleri olarak görev yapan proteoglikanlar, matriksin yapısal ve fonksiyonel bütünlüğünün korunmasının yanı sıra yeniden şekillenmesinde oldukça etkilidirler [2]. Bu proteoglikanlardan versikan ve agrekana karşı katalitik aktiviteye sahip olan bazı ESM metalloproteinazları görev almaktadır [3].Ovariyan fonksiyon, üreme döngüsü boyunca meydana gelen bir dizi doku yeniden şekillenme olaylarına bağlıdır [4]. Ovaryumdaki ESM’nin çoğalma, farklılaşma, hayatta kalma dahil olmak üzere folikül büyümesi ve olgunlaşması için gerekli olan hücresel süreçleri düzenlediği bilinmektedir [5]. ESM’nin sentezi ve degradasyonu ise ovülasyon, korpus lüteum oluşumu ve lüteal regresyon için hayati öneme sahiptir [4]. ESM dönüşüm ve homeostazisinin kontrolü, matriks metalloproteinazları (MMP) olarak bilinen proteolitik enzimlerin etkisiyle gerçekleşmektedir. MMP’ından biri olan ADAMTS-1 (A Disintegrin and Metalloproteinase with Thrombospondins Motifs 1), ovaryumdaki foliküler gelişim sırasında folikül bütünlüğünü ve işlevselliğini sürdürmek amacıyla yeniden şekillenmede rol oynamaktadır [6]. Esas olarak mural granuloza hücreleri tarafından üretilen ADAMTS-1’in [7,8] mRNA ekspresyonunun rodent ovaryumunda LH artışından sonra yükselerek preovülatör foliküllerde bazı proteoglikanların parçalandığı yer olan kumulus oosit kompleksinde lokalize olduğu tanımlanmıştır [7]. Ayrıca ADAMTS-1’den yoksun farelerin ovariyan foliküllerinde olgun oositlerin hapsolduğu bildirilmiş ve normal ovülasyon için ADAMTS-1’in gerekli olduğu öne sürülmüştür [9].
Ovaryum, foliküllerin sürekli olarak büyüyüp ovüle olduğu veya gerilediği döngüsel doku morfogenezisinden geçen dinamik bir organdır [10-12]. Bu döngüsel aşamalar, kontrollü yeniden şekillenme, hücre farklılaşması ve hücre ölümü süreçleri boyunca memeli ovaryumunun sabit tutulmasını sağlamaktadır [13]. Ovaryumda foliküler gelişim sırasında yani folikül büyürken ve küçük bir primordiyal folikülden büyük bir preovülatör Graff folikülüne giden yol boyunca farklılaştıkça, ESM’de kapsamlı hücresel proliferasyon ve yeniden şekillenme meydana gelmektedir. Foliküler ESM’deki morfolojik değişiklikler, ovülasyondan önce ovariyan MMP aktivitesinde bir artışı içeren bir dizi proteolitik olayın etkisiyle meydana gelmektedir. Ovülasyon sürecinde proteolizisin apikal foliküler bağdokusunu bozduğu, foliküler duvar yapısının bütünlüğünü değiştirdiği ve böylece oosit salınımını kolaylaştırdığı varsayılmaktadır [6]. Dolayısıyla MMP sisteminin, östrüs siklusu boyunca ovaryumda meydana gelen bu dinamik yapısal değişiklikleri düzenlediği düşünülmektedir. Bununla birlikte bu sistemdeki bazı MMP’ının salınımını veya etkinliğini modüle eden ADAMTS-1 proteazının, östrüs siklusu evrelerindeki rolü tam olarak bilinmemektedir. Bu amaçla mevcut çalışmada, sıçanların farklı östrüs siklusu evrelerindeki ovaryum dokularında muhtemel ADAMTS-1 immünolokalizasyonunun gösterilmesi amaçlandı.
Gereç ve Yöntem
Araştırma ve Yayın Etiği: Sıçanlar üzerinde uygulanan tüm prosedürler, Fırat Üniversitesi Hayvan Deneyleri Yerel Etik Kurulu (FÜHADYEK) tarafından onaylanmış etik kurul izni (Etik no: 13.02.2019-2019/03-31-2019/20) ile gerçekleştirildi.Hayvanlar ve Deneysel Dizayn: Çalışmada 3-4 aylık, 18 adet dişi Wistar Albino cinsi sıçan kullanıldı. Sıçanlar, Fırat Üniversitesi Deneysel Araştırmalar Merkezi’nden (FÜDAM, Elazığ, TÜRKİYE) temin edildi ve çalışma süresince buradaki standart laboratuvar koşullarında (% 40-60 nem, 24±3 °C sıcaklık, 12 saat aydınlık: 12 saat karanlık döngüsü) barındırılarak yem ve su ad libitum olarak sağlandı. Östrüs siklusunun evreleri vajinal smear yöntemi ile belirlendi ve ardışık üç düzenli siklus takibi gösteren hayvanlar çalışmaya dahil edildi [14]. Vajinal smear örnekleri incelendiğinde; proöstrüsün erken evresinde şişmiş oval düz nükleer epitelyal hücreler, östrüs evresinde çoğunlukla keratinize epitelyal hücreler ve diöstrüs evresinde çoğunlukla beyaz kan hücreleri tespit edildi. Sıçanlar, her grupta 6 adet olmak üzere toplam üç gruba ayrıldı. Gruplar; proöstrüs (Grup I), östrüs (Grup II) ve diöstrüs (Grup III) olarak belirlendi.
Işık Mikroskop Prosedürü: Sıçanlar dekapite edilerek laparatomi ile ovaryum dokuları alınıp immunohistokimyasal incelemeler için değerlendirildi. Dokular, formalin solüsyonunda (%10) tespit edildikten sonra dereceli alkol serilerinden geçirilerek parafin bloklar hazırlandı [15]. 5 μm kalınlığındaki kesitler immünohistokimyasal incelemeler için kullanılarak ışık mikroskobu (Olympus BX-51, Olympus Optical Co., Ltd., Tokyo, JAPAN) altında değerlendirildi.
İmmünohistokimya Prosedürü: Avidin-biotin-peroksidaz kompleksi yöntemine göre immünohistokimya (İHK) boyama prosedürü uygulandı [16,17]. Rabbit poliklonal Anti-ADAMTS-1 antikoru (1/300; ab39194; Abcam, Cambridge, UK) birincil antikor olarak uygulandı. Diğer aşamalar için uygulanan İHK kiti (Cat. No. TP-015-HA, UltraVision Detection System, Anti-polyvalent, HRP/AEC, Thermo Fisher Scientific Co., USA) temin edilen firmanın talimatlarına göre kullanıldı. Boyama, 3-amino-9-ethylcarbazole (AEC) kromojeni kullanılarak tamamlandı. Kesitler, Mayer’in hematoksileni ile zıt boyanarak medium ile kapatıldı. İHK boyamaları 0=negatif, 0.5=eser, 1=hafif, 2=orta ve 3=yoğun olmak üzere 0-3 arasında sayısal bir puanlama ile hesaplandı. Negatif alanlara 0, ˂% 25 boyama alanlarına 0.1, %26-50 boyama alanlarına 0.4, %51-75 boyama alanlarına 0.6 ve %76-100 boyama alanlarına 0.9 değerleri verildi. Nihai histoskor hesaplaması: Histoskor= Alan×Yoğunluk formülü kullanılarak yapıldı [18].
İstatistiksel Analiz: İstatistiksel veriler, IBM SPSS/PC (Versiyon 21.0, IBM Co., North Castle, New York, ABD) yazılım programı ile analiz edildi. Veriler ortalama ± standart sapma olarak sunuldu. Her bir sürekli değişken, normallik Shapiro Wilks testi ile kontrol edildi. Sürekli değişkenler parametrik olmayan veriler için Kruskal-Wallis ile Mann-Whitney U testi kullanılarak post hoc analizi ile karşılaştırıldı. İstatistiksel anlamlılık P<0.05 olarak belirlendi.
Bulgular
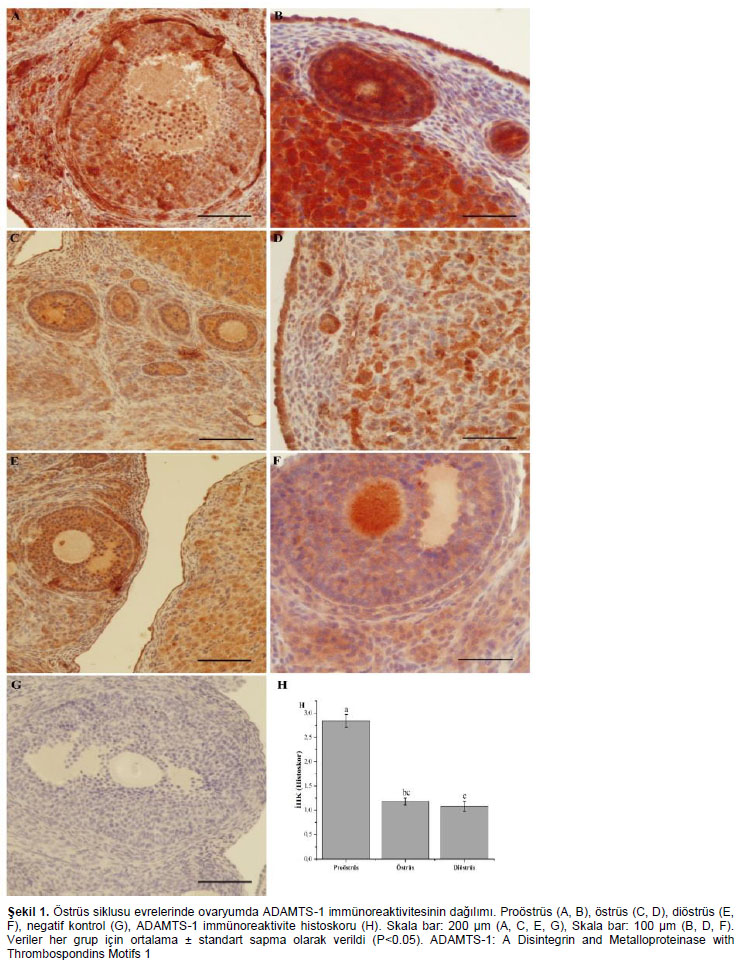
İmmünohistokimyasal Değerlendirmeler: Proöstrüs evresinde folikül epitel hücreleri, teka hücreleri, lüteal hücreler ve intersitisyel hücrelerde yoğun ADAMTS-1 immünoreaktivitesi gözlendi (Şekil 1A). Özellikle lüteal hücrelerde gözlenen yaygın boyamanın, nükleus çevresindeki sitoplazmada yoğunlaşma eğilimi sergilediği tespit edildi (Şekil 1B). Östrüs evresinde proöstrüs evresine göre folikül epitel hücreleri, teka hücreleri, intersitisyel hücreler ve lüteal hücrelerde daha az yoğun ADAMTS-1 immünoreaktivitesi belirlendi (Şekil 1C). Bu hücrelerdeki boyamanın yaygın olduğu ve daha çok sitoplazmada lokalize olduğu dikkati çekti (Şekil 1D). Diöstrüs evresinde folikül epitel hücreleri, teka hücreleri, lüteal hücreler ve intersitisyel hücrelerde ADAMTS-1 immünoreaktivitesi saptandı (Şekil 1E). Boyama yoğunluğunun, foliküler hücreler ile teka hücrelerinde östrüs evresine benzer olduğu, lüteal hücreler ve intersitisyel hücrelerde ise daha hafif olduğu göze çarptı (Şekil 1F). ADAMTS-1 immünoreaktivitesine ait histoskor verileri Şekil 1H’de verildi. Bu verilere göre, ADAMTS-1 immünoreaktivitesinin proöstrüs evresinde (2.84±0.13) östrüs (1.18±0.07) ve diöstrüs (1.08±0.10) evrelerine göre en yüksek değerde (P<0.05) olduğu belirlendi.
Tartışma
Matriks metalloproteinazları, östrüs siklusu boyunca ovaryumda meydana gelen yapısal değişiklikleri düzenleyerek reprodüktif fonksiyonları kontrol etmektedir. Çeşitli hormonlar, sitokinler ve büyüme faktörleri tarafından düzenlenen bu yapısal değişiklikler, ovaryum fizyolojisi için oldukça önemlidir [4]. Ovülasyon, östrüs siklusu sırasında lüteinleştirici hormon (LH) dalgalanması tarafından harekete geçirilen dinamik bir süreç olarak tanımlanmaktadır. LH, folikül duvarının parçalanması ve oositin ekstrüzyonu ile sonuçlanan bir dizi biyokimyasal olayı başlatmakta ve senkronize etmektedir [19,20]. Bu biyokimyasal olaylar yapısal değişiklikleri düzenleyen faktörler ile MMP gibi proteolitik enzimlerin sentezini ve salgılanmasını içermektedir. Ovülasyon öncesi proteolitik olayların etkisiyle meydana gelen ovariyan MMP aktivitesindeki artış ise foliküler ESM’de değişikliklere yol açmaktadır. Foliküler ESM’deki bu değişikliklerle bağlantılı olarak foliküler apeksin granuloza hücrelerinde bozulma ve kollajen matrikste parçalanma gözlenmektedir [6].Matriks metalloproteinaz üyesi olan ADAMTS-1’in foliküler yırtılmaya aracılık eden bir proteaz olduğu bilinmektedir. ADAMTS-1, granuloza hücre reseptörlerini bloke eden proteoglikanları parçalayarak bu hücrelerin gonadotropinlere olan hormonal tepkisini kolaylaştırmakta ve oosit salınımına izin vermektedir [21]. Ayrıca ADAMTS-1’in östrüs siklusu evrelerindeki ovariyan yapısal değişikliklerin düzenlenmesinde etkili olan bazı faktörlerin salınımını veya etkinliğini modüle ettiği düşünülmektedir.
Çalışmada, siklus evrelerindeki dişi sıçanların ovaryum dokularında ADAMTS-1 immünoreaktivitesinin yoğunluğu ve yaygınlığı incelendi. Östrüs siklusu sırasında ADAMTS-1 immünoreaktivitesinin siklus aşamaları boyunca değişiklikler sergilediği tespit edildi. Foliküler gelişimin gözlendiği proöstrüs evresinde boyama yoğunluğunun ve yaygınlığının oldukça dikkat çekici olduğu gözlendi. Bu bağlamda, insan koriyonik gonadotropini (hCG) ile süperovüle edilmiş immatür sıçanlarda olgun foliküllerin granuloza hücrelerine lokalize olan ADAMTS-1’in belirgin bir periovülatör artışı ortaya konulmuştur [22]. ADAMTS-1 null mutasyonuna sahip farelerde yapılan çalışmalar, ovülasyonun % 70-90 oranında azaldığını kanıtlamıştır. Bununla birlikte bu farelerin, folikülogenezis evrelerinde de belirgin bir gecikme gösterdikleri belirtilmiştir [23]. Ayrıca başka bir çalışmada [9], ADAMTS-1 null farelerde oositlerin foliküllerden salınımının azalmasıyla birlikte ovülasyon sürecinin bozulduğu ve infertilitenin oluştuğu bildirilmiştir. Bahsedilen bilgiler doğrultusunda, bu evredeki foliküler gelişimin folikül ESM’indeki morfolojik değişiklikleri beraberinde getirdiği ve proteolitik aktivitenin de gerekli olduğu kanısına varılmaktadır. Dolayısıyla ADAMTS-1’in de bu yapısal değişiklikler üzerinde önemli bir rolü olduğu düşünülmektedir.
Foliküler gelişimin devam ettiği ve sonrasında ovülasyon sürecinin başladığı östrüs evresinde, proöstrüs evresine göre daha az yoğunlukta ADAMTS-1 immünoreaktivitesi belirlendi. Ovülasyon öncesi aşamada folikül duvarını kaplayan mural hücrelerden salgılanan ADAMTS-1’in, genişleyen kumulus hücre matriksine lokalize olduğu ve bu işlem sırasında versikanı parçaladığı bildirilmiştir [9]. ADAMTS-1 null farelerde yapılan çalışmalarda, versikan yıkımlanamadığı için ovülator fonksiyonunun bozulduğu ve infertilitenin gözlendiği ortaya konulmuştur. Buna ilaveten bu farelerin ESM’nin yeniden şekillenme sürecinin de oluşmadığı saptanmıştır [1]. Ayrıca ovülasyon esnasında kumulus oosit kompleksinin ovaryumdan salınabilmesi için tekal hücre ESM’nin de parçalanması gerektiği belirtilmiştir [24]. ESM’de gözlenen bu morfolojik değişikliklerin sonucunda oluşan ürünlerin, ADAMTS-1 işlevselliği için substrat görevi gördüğü ve ADAMTS-1’i aktive ettiği ifade edilebilmektedir.
Siberian hamsterlarında östrüs siklusu boyunca ovariyan MMP’lerin immünohistokimyasal olarak incelendiği bir çalışmada, diöstrüs evresinde gözlenen MMP yoğunluğundaki azalmanın, östradiol (E2) konsantrasyonundaki düşüş ile bağlantılı olduğu ifade edilmiştir [4]. Ovülasyon sonrası regresyon süreci olarak tanımlanan diöstrüs evresinin başlarında, E2 seviyelerinin düşük olduğu bilinmektedir [25]. Ayrıca bu evrede antral foliküllerin sayısının ve foliküler hücre boyama yoğunluğunun azaldığı bildirilmiştir [4]. Benzer şekilde çalışmada diöstrüs evresinde, ADAMTS-1 immünoreaktivitesinin tüm ovarian hücrelerde azaldığı belirlendi.
Bu gözlemler ışığında, sıçan ovaryumunun farklı östrüs siklusu evrelerindeki immünohistokimyasal ve moleküler ADAMTS-1 ekspresyonuna daha önce rastlanmamıştır. Bu çalışma normal ovarian siklusundaki ADAMTS-1 lokalizasyonunu inceleyen ilk araştırmadır. Elde edilen sonuçlar ile bu süreçteki bir dizi olayın meydana gelebilmesi için ADAMTS-1’in anahtar bir rol oynadığı gösterilmektedir. Foliküler gelişim, ovülasyon ve regresyon süreçlerini içeren farklı siklus evrelerinin ESM’indeki yapısal değişikliklerle ilişkili olarak ADAMTS-1 immünoreaktivitesinde farklılıklar olduğu belirlendi. Özellikle proöstrüs evresindeki yoğun ADAMTS-1 immünoreaktivitesi, sıçanların preovülatuar döneminde proteazların rolünün oldukça önemli olduğunu göstermektedir. Dolayısıyla ADAMTS-1’in reprodüktif fonksiyonlardaki proteaz akvitesinin hala araştırılması gereken yönlerinin olduğu ifade edilebilir.
References
- Kalem Z, Namlı Kalem M, Şimşir C. Reproduktif sistemde ADAMTS genleri. Uludağ Üniversitesi Tıp Fakültesi Dergisi 2019; 45: 111-118.
- Cömertoğlu İ, Sarıkaya E, Demirel M, Akyol S, Demircan K. ADAMTS gen ailesinin obstetrik ve jinekolojideki yeri. Jinekoloji-Obstetrik ve Neonatoloji Tıp Dergisi 2014; 11: 144-149.
- Torres-Collado AX, Kisiel W, Iruela-Arispe ML, Rodriguez-Manzaneque JC. ADAMTS1 interacts with, cleaves, and modifies the extracellular location of the matrix inhibitor tissue factor pathway inhibitor-2. J Biol Chem 2006; 281: 17827-17837.
- Vrooman LA, Young KA. Ovarian matrix metalloproteinases are differentially regulated during the estrous cycle but not during short photoperiod induced regression in Siberian ham-sters (Phodopus sungorus). Reprod Biol Endocrinol 2010; 8: 79.
- Berkholtz CB, Shea LD, Woodruff TK. Extracellular matrix functions in follicle maturation. Semin Reprod Med 2006; 24: 262-269.
- Curry Jr TE, Osteen, KG. The matrix metalloproteinase system: Changes, regulation, and impact throughout the ovarian and uterine reproductive cycle. Endocr Rev 2003; 24: 428-465.
- Russel DL, Doyle KM, Ochsner SA, Sandy JD, Richards JS. Processing and localization of ADAMTS-1 and proteolytic cleavage of versican during cumulus matrix expansion and ovulation. J Biol Chem 2003; 278: 42330-42339.
- Dunning KR, Lane M, Brown HM, et al. Altered composition of the cumulus-oocyte complex matrix during in vitro maturation of oocytes. Hum Reprod 2007; 22: 2842-2850.
- Mittaz L, Russell DL, Wilson T, et al. Adamts-1 is essential for the development and function of the urogenital system. Biol Reprod 2004; 70: 1096-1105.
- Goldman S, Shalev E. MMPS and TIMPS in ovarian physiology and pathophysiology. Front Biosci 2004; 9: 2474-2483.
- Hagglund AC, Basset P, Ny T. Stromelysin-3 is induced in mouse ovarian follicles undergoing hormonally controlled apoptosis, but this metalloproteinase is not required for follicular atresia. Biol Reprod 2001; 64: 457-463.
- Smith MF, Ricke WA, Bakke LJ, Dow MP, Smith GW. Ovarian tissue remodeling: Role of matrix metalloproteinases and their inhibitors. Mol Cell Endocrinol 2002; 191: 45-56.
- Brown HM, Dunning KR, Robker RL, Pritchard M, Russell DL. Requirement for ADAMTS-1 in extracellular matrix remodeling during ovarian folliculogenesis and lymphangiogenesis. Dev Biol 2006; 300: 699-709.
- Risvanli A, Aydin M, Kaygusuzoğlu E, Timurkan H. The effect of thyroidectomy on sexual cycle and pregnancy rates in rats. Turk J Vet Anim Sci 2003; 27: 873-877.
- Gur FM, Aktas I. The ameliorative effects of thymoquinone and beta aminoisobutyric acid on streptozotocin-induced diabetic cardiomyopathy. Tissue Cell 2021; 71: 101582
- Hsu SM, Raine L, Fanger H. Use of avidin-biotin-peroxidase complex (ABC) inimmunoperoxidase techniques: A comparison between ABC and unlabeledantibody (PAP) procedures. J Histochem Cytochem 1981; 29: 577-580.
- Gur FM, Ikinci Keles A, Erol HS, et al. The effect of 900-MHz radiofrequency electromagnetic fields during the adolescence on the histological structure of rat testis and its androgen and estrogen receptors localization. Int J Radiat Res 2021; 19: 135-144.
- Aydin S, Kuloglu T, Ozercan MR, et al. Irisin immunohistochemistry in gastrointestinal system cancers. Biotech Histochem 2016; 91: 242-250.
- Taskiran N. Physiogical role of kisspeptin in the hypothalamic-pituitary-gonadal axis. Van Vet J 2017; 28: 57-61.
- Aritonang TR, Rahayu S, Sirait LI, et al. The role of FSH, LH, estradiol and progesterone hormone on estrus cycle of female rats. Int J Sci: Basic Appl Res 2017; 35: 92-100.
- Park M, Park SH, Park H, et al. ADAMTS-1: A novel target gene of an estrogen-induced transcription factor, EGR1, critical for embryo implantation in the mouse uterus. Cell Biosci 2021; 11: 155.
- Espey LL, Yoshioka S, Russell DL, et al. Ovarian expression of a disintegrin and metalloproteinase with thrombospondin motifs during ovulation in the gonadotropin-primed immature rat. Biol Reprod 2000; 62: 1090-1095.
- Namli Kalem M, Kalem Z, Açar Eser A, Demircan K. Matricellular proteins and related ADAMTS genes in infertility. Turkiye Klinikleri J Gynecol Obst 201; 727: 138-149.
- Holmbeck K, Bianco P, Caterina J, et al. MT1-MMP-deficient mice develop dwarfism, osteopenia, arthritis, and connective tissue disease due to inadequate collagen turnover. Cell 1999; 99: 81-92.
- Yiğit AA, Böyük G, Kabakçı R. Dişi ratlarda üreme fizyolojisi. Dicle Üniversitesi Veteriner Fakültesi Dergisi 2019; 12: 163-167.
- DÜZENLİ KIZGINLIK GÖSTEREN VE GÖSTERMEYEN İNEKLERDE KAN SERUMUNDA BAZI MİNERAL MADDE DÜZEYLERİ ÜZERİNE ÇALIŞMA
- İNEKLERDE SİKLUS SÜRESİNCE SERUM PROGESTERON VE BAZI MİNERAL MADDE DÜZEYLERİ VE ARALARINDAKİ İLİŞKİ
- ÖSTRUS DÖNEMİNDEKİ SIĞIRLARDA PLAZMA ADRENALİN, NORADRENALİN İLE VİTAMİN A VE E DÜZEYLERİ
- İNEKLERDE ÖSTRÜS SİKLUSU BOYUNCA KAN SERUMU VE PLAZMASI ÇİNKO (ZN) VE BAKIR (CU) DÜZEYLERİNİN ARAŞTIRILMASI
- OKLU KİRPİLERİN (HYSTRIX CRISTATA) BULBUS OLFAKTORYUSUNDA SOMATOSTATİN İMMUNOREAKTİVİTESİ